domingo, 19 de abril de 2015

Ciclo de Krebs

CICLO DE KREBS

1. DEFINICIÓN DEL CICLO METABOLICO:
  • Es una sucesión de reacciones químicas que forman parte de la respiración celular en todas las células aeróbicas (células en presencia de O), menos en glóbulos rojos ya que no tienen mitocondria.
  • En organismos aeróbicos, el ciclo de Krebs es parte de la vía catabólica que realiza la oxidación de hidratos de carbono, ácidos grasos y aminoácidos hasta producir CO2, liberando energía en forma utilizable (poder reductor y GTP).
  • Ruta metabólica anfibólica (participa tanto en procesos anabólicos como catabólicos).
  • Función:
- Catabólica: Oxidación de glúcidos, ácidos grasos y proteínas para generar energía.
- Anabólica: Algunos intermediarios son precursores biosínteticos.

2. LUGAR CELULAR Y TEJIDOS DONDE SE REALIZA:

  • Se lleva a cabo en la matriz mitocondrial.
  • Todas las células con mitocondrias (excepciones: eritrocitos, retina...)
  • Prolifera en tejido cardíaco y hepático. 
3. PRECURSORES NECESARIOS PARA EL METABOLISMO:
  • 1 molécula de Acetil CoA. 2 moléculas de Piruvato provenientes de la glucólisis (entra 1 en cada ciclo).
  • NAD
  • FAD 
  • 3 moléculas de H2O
4. CICLO METABOLICO COMPLETO:

Complejo Piruvato Deshidrogenasa (PDH):
·      Descarboxilación oxidativa del piruvato (un a-cetoácido).
·      Irreversible
·      Ocurre en la mitocondria
·      Regulación alostérica y por modificación covalente
·      Conversión del piruvato en acetil-CoA
·      El grupo carboxilo del piruvato se libera como CO2, mientras que los 2 carbonos restantes forman la porción acetilo de la acetil-CoA
·      Comporta la generación de un transportador electrónico reducido (NADH), la descarboxilación del piruvato y la activación metabólica de los 2 carbonos restantes del piruvato.
·      Reacción de 5 pasos
·      Intervienen en ella 3 enzimas:
-       E1 = Piruvato deshidrogenasa (TPP)
-       E2 = Dihidrolipoamida transacetilasa (lipoato, CoA)
-       E3 = Dihidrolipoamida deshidrogenasa (FAD, NAD)
* Las 3 enzimas se ensamblan en un complejo multienzimático muy organizado denominado complejo piruvato deshidrogenasa.
·      Intervienen en ella 5 coenzimas:
-       Pirofosfato de tiamina (TPP)
-       Ácido lipoico
-       Coenzima A (Vitamina B3, niacina)
-       Dinucleótido de flavina y adenina (FAD, Vitamina B2; riboflavina)
-       NAD (Vitamina B3, niacina)

Reacciones propias del ciclo:

Reacción 1: Condensación del oxalacetato con la acetil CoA.
La enzima citrato sintasa condensa a la acetil-CoA (2C) con el oxalacetato (4C) para dar una molécula de citrato (6C). Como consecuencia de esta condensación se libera la coenzima A (HSCoA). La reacción es fuertemente exergónica: es irreversible.

-       La Acetil CoA transfiere un grupo acetilo de 2C para el oxalacetato de 4C. Esto forma la molécula de citrato de 6C.
-       Subreacción 1.1: El ácido citrico pierde H2O y forma el aconitato.
-       Enzima: Citrato sintasa

Reacción 2: isomerización del citrato a isocitrato
La isomerización del citrato en isocitrato ocurre por dos reacciones, que se resumen en una.

-       La enzima aconitasa recoge el agua y con esto el citrato se reorganiza para formar isocitrato (6C).
-       Enzima: Aconitasa

Reacción 3: oxidación y decarboxilación del isocitrato
El isocitrato es sustrato de la isocitrato deshidrogenasa, enzima que tiene como cofactor un NAD, que forma parte de la cadena respiratoria. En la reacción 3 se resumen dos reacciones a partir de las cuales el isocitrato forma α-cetoglutarato (5C). Para lograr ese producto ocurre una decarboxilación, es decir la liberación de una molécula de CO2, y la reducción de un NAD que permite la formación de 3 ATP.

-       La enzima deshidrogenasa mitocondrial depende de la presencia de NAD y de Mn o Mg. Primero es catalizada la oxidación del isocitrato a oxalsuccinato, lo que produce una molécula de NADH a partir de NAD.
-       Subreacción 3.1: Después se produce una descarboxilación, es decir, la salida de una molécula de CO2, que conduce a la formación de alfa-cetoglutarato de 5C, caracterizado por 2 carboxilos en las extremidades y una cetona en posición alfa con respecto de uno de los 2 grupos carboxilo.
-       Enzima: Isocitrato deshidrogenasa

Reacción 4: el α-cetoglutarato se transforma en succinil-CoA
Este paso implica la segunda decarboxilación oxidativa, catalizada por la α-cetoglutarato deshidrogenasa, que lleva a la formación de succinil-CoA (4C). El NAD es la coenzima de la deshidrogenasa, de manera que se formarán 3 ATP como consecuencia de la actividad de cadena respiratoria.
-       Consiste en la unión de una CoA con el alfa-cetoglutarato, que lleva a la formación de Succinil CoA.
-       Enzima: Alfa-cetoglutarato deshidrogenasa

Reacción 5: la succinil-CoA rinde succinato y GTP
La succinil-CoA, es un tioéster de alta energía con un ∆G°′ de hidrólisis de -33.5 KJ.mol-1 aproximadamente. La energía liberada por la ruptura de ese enlace se utiliza para generar un enlace fosfoanhidro entre un fosfato y un GDP para dar 1 GTP por fosforilación a nivel de sustrato. En la reacción se libera HSCoA. El GTP se puede convertir en ATP según la siguiente reacción:

GTP + ADP GDP + ATP ∆G°′ = 0 KJ.mol- 1

-       La CoA se retira del Succinil-CoA lo que produce el succinato.
-       Enzima: Succinil-CoA sintetasa

Reacción 6: el succinato se transforma en fumarato
El succinato es oxidado a fumarato por la succinato deshidrogenasa, enzima que tiene como cofactor al FAD: se producen 2ATP en la cadena respiratoria. La enzima usa FAD porque la energía asociada a la reacción no es suficiente para reducir al NAD.
-       Mediante la oxidación del succinato al encontrarse con una molécula de FAD se forma el fumarato y un nuevo compuesto que es el FADH2.
-       Enzima: Succinato deshidrogenasa

Reacción 7: el fumarato se hidrata y genera malato
La fumarasa cataliza la adición de agua, es decir la hidratación del fumarato. El producto de la reacción es el malato.
-       El fumarato reacciona con el agua mediante la enzima fumarasa formando el malato.
-       Enzima: Fumarasa

Reacción 8: el malato se oxida a oxalacetato
Dada la naturaleza cíclica de la vía, las reacciones en su conjunto conducen a la regeneración del oxalacetato. La malato deshidrogenasa cataliza la oxidación del malato a oxalacetato, con la reducción de un NAD: se forman 3 ATP en la cadena respiratoria.
-       En esta última reacción el malato se oxida al encontrarse con un NAD formando el oxalacetato y un NADH.
-       Enzima: Malato deshidrogenasa

5. DIFERENCIAR LAS REACCIONES QUE PARTICIPAN:


Rutas anapleroticas (aquellas que permiten reponer intermediarios del ciclo de Krebs que han sido sustraídos por otras rutas biosínteticas. Mantienen un equilibrio de las concenctraciones intramitocondriales de los intermediarios del ciclo).


6. TIPOS DE REGULACION DEL CICLO Y QUIENES SON LAS ENZIMAS REGULADORAS DEL MISMO:

La regulación del ciclo hace posible la producción de moléculas de acuerdo a las necesidades celulares, y asegura que no ocurra sobre o sub producción en un momento dado. La regulación del ciclo se da en diferentes puntos, porque puede alimentarse o ser abastecido a través de cualquiera de sus intermediarios. La regulación es compleja en comparación con la de vías catabólicas como la glucólisis, y se considerarán situaciones de regulación relacionadas al estado energético celular.
•      La regulación de las enzimas es por modulación alostérica, por modificación covalente y por acumulación de productos. La “lógica” de la regulación se rige principalmente por la relación ATP/ADP y NADH.H/NAD, así como por las concentraciones de algunos intermediarios del ciclo.
•      Las relaciones entre ATP/ADP y NADH.H/NAD están relacionadas entre sí a través de la fosforilación oxidativa que ocurre en la cadena respiratoria, y ambas son señales del estado energético de la célula.

Los sitios primarios de control son las enzimas alostéricas: la isocitrato deshidrogenasa y la α-cetoglutarato deshidrogenasa. 


La isocitrato deshidrogenasa es estimulada alostéricamente por la presencia de ADP, que aumenta la afinidad de la enzima por el sustrato. Las uniones de isocitrato, de NAD+, de Mg2+, y de ADP, a la enzima son mutuamente cooperativas en sentido activador. Por contra, el NADH inhibe la enzima por el desplazamiento directo de NAD+. El mismo ATP tiene efecto inhibitorio.

El segundo sitio del control del ciclo de Krebs está cerca de la α-cetoglutarato deshidrogenasa. Algunos aspectos del control de esta enzima son parecidos a los del complejo enzimático de la piruvato deshidrogenasa, como puede esperarse dada la extrema homología entre las dos enzimas. La α-cetoglutarato deshidrogenasa es inhibida por el succinil-CoA y el NADH, es decir, los productos de la reacción que cataliza. La α-cetoglutarato deshidrogenasa puede ser también inhibida genéricamente por un alto nivel energético presente en la célula. Esto significa que, en presencia de altos niveles de ATP, la célula es capaz de reducir la eficiencia del proceso de producción de energía. 

En muchas bacterias, también se controla la entrada en el ciclo de las moléculas con dos átomos de carbono. En ellos, la síntesis de citrato, oxalacetato y acetil-CoA es la sede de una importante regulación. EL ATP, en efecto, es un inhibidor alostérico de la citrato sintasa. El efecto concreto del ATP es aumentar la KM de la enzima por el acetil CoA. De este modo, cuanto más ATP está presente en la célula menos Acetil-CoA se introduce en el ciclo.

7. PRODUCTOS DEL METABOLISMO:
·      1 ciclo de Krebs completo produce; 1 GTP (1 ATP), 3 NADH, 1 FADH2 y 2 CO2.
·      Considerando que en el proceso de glicólisis se producen 2 moléculas de piruvato por molécula de glucosa, el ciclo de Krebs produce por cada molécula de glucosa; 2 GTP (2 ATP), 6 NADH, 2 FADH2 y 4 CO2.
·      8 electrones que pasarán a la cadena de transporte electrónico.

8. EPONIMO DEL CICLO METABOLICO:
·      Hans Krebs.
·      1937; Propuso que los combustibles orgánicos (piruvato) se oxidan a través de una ruta cíclica.
·      Premio nobel de medicina en 1953 compartido con Fritz Lipmann (descubridor de la coenzima A).
·      Postuló que los hidratos de carbono entran en el ciclo a través del piruvato, que reacciona con el oxalacetato para dar citrato y CO2. Actualmente sabemos que el piruvato debe oxidarse primero (liberando CO2) y que la acetil-CoA es la molécula que reacciona posteriormente con el oxalacetato para formar citrato. Conocemos también un derivado con CoA del succinato, la succinil-CoA. El reconocimiento de estos intermediarios activados del ciclo debía esperar al descubrimiento de la coenzima A por Fritz Lipmann en 1947. Excepto por estos cambios, la ruta propuesta por Krebs es correcta.
·      Fritz Lipmann y Nathan Kaplan (1953) descubrieron la Coenzima A, y el trabajo de Severo Ochoa y Feodor Lynen (1951) demostró que lo que entra en el ciclo de Krebs es el acetil-CoA y no el piruvato o el acetato.

9. CICLOS METABOLICOS CON LOS QUE SE RELACIONA:
El ciclo de Krebs ocupa una posición central en el metabolismo de los seres vivos. Es la ruta oxidativa central de la respiración celular, proceso mediante el cual se catabolizan todos los combustibles metabólicos (hidratos de carbono, lípidos y proteínas), en los organismos y tejidos aerobios.

·      Glucólisis: La glucólisis degrada la glucosa (y otras moléculas de seis átomos de carbono) en piruvato y un α-cetoácido que contiene tres átomos de carbono. En los eucariotas, el piruvato se traslada del citoplasma (sede de la glucólisis) a las mitocondrias, donde pierde un átomo de carbono y se convierte en acetil-CoA mediante la piruvato deshidrogenasa. En el interior de la mitocondria, el acetil-CoA puede entrar en el ciclo de Krebs.
·      Catabolismo de las proteínas: En lo que concierne a las proteínas, son degradadas mediante mecanismos de proteolisis por enzimas proteasas, que las trocean en sus constituyentes fundamentales: los aminoácidos. Algunos aminoácidos pueden constituir una fuente de energía, ya que son convertibles en intermediarios del ciclo mismo, por ejemplo el aspartato, la valina y la isoleucina. Otros, convertibles en moléculas glucídicas, pueden entrar en el ciclo pasando por las rutas catabólicas típicas de los glúcidos, por ejemplo la alanina, convertible en piruvato. 
·      Beta-Oxidación: Proceso catabólico en el que los ácidos grasos sufren remoción de un par de átomos de carbono en cada ciclo de la oxidación hasta que el ácido graso se descompone por completo en forma de moléculas acetil-CoA. Estas pueden ingresar en el ciclo de Krebs, y las coenzimas reducidas NADH y FADH2 sirven como donadores de electrones en la cadena respiratoria. La oxidación beta tiene lugar en la matriz interior de las mitocondrias y se compone de 4 pasos por ciclo.

·      Cadena de transporte de electrones: El ciclo de Krebs siempre es seguido por una fosforilación oxidativa, una cadena de transporte de electrones. Una no tendría sentido sin la otra en cuanto que el ATP y el GTP producidos por el ciclo es escaso y la producción de NADH y FADH2 llevaría a un entorno mitocondrial excesivamente reducido, mientras que la cadena respiratoria por sí sola necesitaría una fuente de cofactores reducida para la oxidación del entorno. Esta respiración celular extrae energía del NADH y FADH2, recreando NAD+ y FAD y permitiendo de tal modo que el ciclo continúe. El ciclo de Krebs no usa oxígeno, que es utilizado en cambio en la fosforilación oxidativa. 

Reacciones en las que intervienen los intermediarios del ciclo:
Los intermediarios del ciclo de Krebs están implicados en numerosas rutas metabólicas. A continuación se enumeran de forma resumida las rutas en las que están implicados los metabolitos del ciclo: 
·      Acetil CoA: beta oxidación; biosíntesis de los ácidos grasos; degradación de la lisina; degradación de la valina, leucina e isoleucina; metabolismo de la fenilalanina. 
α-cetoglutarato: biosíntesis de la lisina; metabolismo del ácido ascórbico; metabolismo del glutamato. 

·      Succinil CoA: metabolismo del propanato; degradación de la valina, leucina e isoleucina; metabolismo de la fenilalanina. 
·      Succinato: metabolismo del butanato; metabolismo de la tirosina. 
·      Fumarato: ciclo de la urea; metabolismo de la arginina y la prolina; metabolismo de la tirosina. 

·      Oxalacetato: metabolismo del glioxilato; metabolismo del glutamato y el aspartato; gluconeogénesis.

10. PATOLOGÍAS DE CADA UNA DE ELLAS 

El Ciclo de Krebs no tiene en sí mismo patologías relacionadas pero sí debido a una falta de enzimas que participan en el o de sustratos (intermediarios) necesarios para su correcto funcionamiento.


Descarboxilación del Piruvato

DESCARBOXILACIÓN DEL PIRUVATO
›---> La conexión entre la llamada fase anaeróbica de la glucólisis, en donde se metaboliza la glucosa para convertirla en 2 moléculas de ácido pirúvico, con la fase aeróbica de la glucólisis, que llevará la degradación de la glucosa hasta CO2 y H2O en el Ciclo de Krebs, consiste en la descarboxilación oxidativa del piruvato a Acetil-CoA.
- La conversión del piruvato a Acetil-CoA por la acción de la Piruvato Deshidrogenasa es un punto crítico del metabolismo, particularmente en el hígado, puesto que disminuye la posibilidad de que el piruvato se reconvierta en glucosa o en ácido láctico.
- La conversión a Acetil-CoAcompromete al piruvato a entrar al ciclo de Krebs

- Proceso intramitocondrial que permite la formación de Acetil-CoA a partir del Piruvato. 
- Produce NADH+H aprovechable en la cadena respiratoria.
- Libera CO2
- En las células eucariotas la descarboxilación del piruvato para producir Acetil-CoA, se realiza dentro de las mitoncodrias. Esto requiere que el piruvato sea transportado a través de la membrana mitocondrial.
- Se sabe que el transporte del piruvato se hace por medio de una proteína transportadora y requiere gasto de energía.
- Una vez dentro de la mitocondria el piruvato es rápidamente descarboxilado y convertido en Acetil-CoA. Esta reacción es irreversible y atrapa la Acetil-CoA en el interior de la mitocondria.
- Tiene lugar en la matriz mitocondrial con la finalidad de que sus productos sean rápidamente aprovechados por el ciclo de krebs o la cadena transportadora de electrones. 
- Presenta una regulación alostérica; si es elevada la enzima se inhibe y si es baja la enzima se activa.
- El piruvato tiene 3C
- Participa 3 enzimas y 5 coenzimas formando un complejo funcional.


ENZIMAS:
  1. Pirivato deshidrogenasa (E1): Produce la eliminación del átomo de carbono del piruvato. Requiere pirofosfato de tiamina como cofactor y origina un acetaldehído, de manera similar a la fermentación alcohólica. 
  2. Dihidrolipoil transacetilasa (E2): Emplea 2 lipoamidas como cofactores enzimáticos, que utiliza para transferir el acetaldehído a una molécula de coenzima A, a la vez que lo oxida generando el Acetil-CoA.
  3. Dihidrolipoil deshidrogenasa (E3): Ayuda en la regeneración de las lipoamidas de la dihidrolipoil transacetilasa. Finalmente los electrones de la oxidación serán cedidos por el FADH2 a una molécula de NAD formando NADH+H. 
COENZIMAS: 
  1. Tiamina pirofosfato (se fosforiló); vitamina B1
  2. FAD (Flavin adenin dinucleotido; vitamina B2)
  3. NAD (Nicotinamida adenina dinucleótido; vitamina B3)
  4. Coenzima A (Ácido pantoténico; vitamina B5)
  5. Lipoamida (Ácido lipoico; ácido graso)

Formación de complejos: 

E1 = Piruvato deshidrogenasa
  • Es el paso límitante de toda reacción de conversión.
  • Requiere Tiamina (Vitamina B1) pirofosfato como cofactor. 
  • La enzima está formada por 24 subunidades en procariotas y 30 en eucariotas. 
E2 = Dihidrolipoil transacetilasa
  • Es la enzima + compleja del grupo.
  • Esta formada por 24 subunidades en procariotas y 60 en eucariotas. 
E3 = Dihidrolipoil deshidrogenasa
  • Parte más sencilla del complejo
  • Formada por 12 subunidades tanto en procariotas como eucariotas 
  • Para que la reacción continue se requiere reformar la Lipoil-CoA, para lo cual el ácido lipoico (lipoamida) debe ser oxidado nuevamente. 
Reacciones

Reacción 1: Piruvato + Tiamina pirofosfato ---(piruvato deshidrogenasa, E1)---> Hidroxietil-TPP + CO2

El piruvato reacciona con tiamina pirofosfato (TPP) en la enzima piruvato deshidrogenasa (E1) del complejo. Este proceso escinde CO2 y genera acetaldehído unido a TPP o hidroxietilamina. 
- Reacción + lenta del proceso.
- La enzima lleva 2H que va a meter en el grupo hidroxilo. 

Reacción 2: Hidroexietilamina + Lipoamida ---(dihidrolipoil transacetilasa, E2)---> TPP + Acetil-lipoamida

La hidroexietilamina reacciona con la lipoamida en una oxidación que genera acetil-lipoamida (catalizada por la dihidrolipoamida aciltransferasa, E2). El oxidante es el grupo disulfuro de la lipoamida que se reduce a sulfhidrilo. El otro azufre se liga al acetil. El ácido lipoico está unido a una lisina específica de la dihidrolipoil transacetilasa. Esta posición de la lipoamida se encuentra en una cadena flexible de aminoácidos que le permiten rotar de un sitio activo al otro. 

Reacción 3: Acetil-lipoamida + CoA-SH ---(dihidrolipoil transacetilasa, E2)---> Dihidrolipoamida + Acetil-CoA

La acetil-lipoamida continua en la dihidrolipoil transacetilasa, donde reacciona con el cofactor CoA-SH. El Acetil de la Acetil-lipoamida es transferido a la CoA, que se oxida y conserva el enlace tioéster rico en energía y se restablece la dihidrolipoamida, que se reduce al adquirir de nuevo el sulfhidrilo. La Acetil-CoA se libera al interior de la matriz mitoncondrial. 

Reacción 4: Dihidrolipoamida + NAD ---(dihidrolipoil deshidrogenasa, E3)---> Lipoamida + NADH+H

La última reacción la cataliza la dihidrolipoil deshidrogenasa, donde se reestablece en el enlace disulfuro de la lipoamida para hacerla reactiva nuevamente. Para ello, se emplea a FAD como intermediario, que se reduce a FADH2 y oxida los sulfuros (que luego se enlazan nuevamente). Finalmente el FADH2 reacciona con NAD, que se reduce a NADH+H y se libera, restituyendo a FAD para una nueva reacción. 

REGULACIÓN
  1. Por anapleurosis ----- Por inhibición competitiva 
  2. Fosforilada o forma inactiva ---- Desfosforilada o forma activa
  3. Por actividad endócrina 
Regulación del piruvato deshidrogenasa
  • Modificaciones alostéricas: Por sus productos finales / Acetil CoA y NADH (ATP)
  • Modificaciones covalentes: Por fosforilación (cinasa) / Por desfosforilación (fosfatasa).
Productos:
- Acetil CoA y CO2

Enfermedad ligada:
Deficiencia de Piruvato deshidrogenasa 
- Niños que la presentan tienen retraso en el desarrollo, tono muscular reducido, ataxia y convulsiones. Algunos tiene  malformaciones cerebrales congénitas. 


Glucólisis

GLUCÓLISIS

- Serie de 10 pasos catalizados por enzimas en las cuales las moléculas de glucosa de 6C se degradan a piruvato de 3C. 
- Ruta de 10 pasos que convierete una molécula de glucosa en 2 moléculas de piruvato, con la generación de 2 moléculas de ATP. Las 10 reacciones entre la glucosa y el piruvato pueden considerarse como 2 fases distintas: 
  • Fase de inversión de energía: En la que se sintetizan azúcares fostato a costa de 2 equivalentes de ATP (que se convierten en ADP) y el sustrato de 6C se desdobla en 2 azúcares fosfato de 3C -> Primeras 5 reacciones.
  • Fase de generación de energía: En la que 2 triosas fosfato se convierten en compuestos de gran energía que transfieren 4 moles de fosfato al ADP dando lugar a 4 moles de ATP -> Últimas 5 reacciones. 
- Otro nombre: Vía de Embden-Meyerhof
- En las células eucariontas se produce en el citosol y en las mitocondrias tiene lugar la oxidacón del piruvato.
- Se lleva a cabo en todas las células del organismo. En el citoplasma de c/u. 
- Tejidos donde actúa: 
  • Hexoquinasa: Todas las células
  • Glucoquinasa: Células del páncreas y hígado
- Es una vía que permite obtener ATP a las células de animales.

- La ecuación neta para la glucolisis es:

 Glucosa+2NAD+2ADP+2Pi --------> 2 Piruvato + 2 NADH+ 2 ATP+2H+2H2O
- Hay 2 tipos de glucólisis: 
  • Aerobica: Con presencia de Oxígeno
  • Anaerobica: Ausencia de Oxígeno
Productos de la glucólisis 
Glucosa --------> 2 Piruvato
2 ADP ----------> 2 ATP 
2 NAD ----------> 2 NADH

La estrategia química de la glucólisis puede condensarse en 3 procesos: 
  1. Adición de grupos fosforilo a la glucosa, para dar compuestos con un bajo potencial de transferencia de grupo fosfato = cebado. 
  2. Conversión química de estos intermediarios con un bajo potencial de transferencia de un grupo fosfato.
  3. Acoplamiento químico de la hidrólisis que produce energía de estos compuestos de alto potencial de transferencia de grupo fosfato, con la síntesis de ATP mediante la transferencia del grupo fosfato al ADP. 
Reacciones:

Reacción 1 (células atrapan la glucosa). Primera inversión de ATP.

- La glucosa se fosforila y se obtiene Glucosa-6-fosfato (G6P).
- Las enzimas son la hexoquinasa o glucoquinasa (depende del tejido).
- Estas consumen moléculas de ATP por ser del grupo "quinasa". 
- Al utilizar el ATP nos quedará ADP.
- Reacción irreversible 

Empezamos con la fosforilación de la glucosa dependiente del ATP, catalizada por la hexoquinasa. La ruta habitual de captación y fosforilación de glucosa es el sistema fosfoenolpiruvato. Este sistema, acopla la fosforilación de la glucosa a su traslado a través de la membrana citoplásmatica. La energía para impulsar estos 2 procesos acoplados la proporciona el fosfoenolpiruvato (PEP). La glucosa 6-fosfato, ahora en el citoplasma, entra directamente en la glucólisis en la rección 2.

Reacción 2: Isomerización de la glucosa-6-fosfato.

- La glucosa-6-fosfato se convertirá en fructosa-6-fosfato por una isomeraza (enzima).
- Esta acción es reversible ya que la fructosa-6-fosfato puede volver a glucosa-6-fosfato y viceversa. 

Catalizada por la glucosa-6-fosfato isomerasa (llamada también fosfoglucoisomerasa), es la isomerización fácilmente reversible de la aldosa, la glucosa-6-fosfato (G6P), a la correspondiente cetosa, la fructosa-6-fosfato (F6P). Esta reacción se produce a través de un intermediarion enediol. 

Reacción 3: Segunda inversión de ATP

- La Fructosa 6 fosfato, pasa a ser Fructosa 1, 6 bifosfato.
- La enzima que trabaja aquí es muy importante porque ayuda en la regulacion de la glucólisis. Su nombre es la Fosfofructoquinasa y se consume a ATP.
- Esta reaccion no es reversible.

La fosfofructoquinasa cataliza una segunda fosforilación dependiente de ATP para producir un derivado de hexosa, la fructosa-1, 6-bifosfato (FBP), fosforilada en ambos carbonos 1 y 6. La fosfofructoquinasa es una enzima alostérica cuya actividad es muy sensible a la situación energética de la célula. Las interacciones con efectores alostéricos activan o inhiben la PFK. Esta regulación aumenta el flujo de carbono a través de la glucólisis cuando existe una necesidad de generar + ATP y lo inhibe cuando la célula contiene dépositos abundantes de ATP o sustrato oxidables.  

NOTA: Si tenemos mucho ATP va a inhibir a la fosfofructoquinasa 1 y no funcionará. Para producir más ATP habrá otra enzima llamada fosfofructoquinasa 2, que convertirá a la F6P en fructosa 2 6 bifosfato y activará de nuevo a la fosfofructoquinasa 1. 

Reacción 4

- Fructosa 1, 6 bifosfato se convertirá en 2 moléculas (triosas): 


Catalizada por la fructosa 1, 6 bifosfato aldolasa, a la que se denomina habitualmente aldolasa. En esta reacción se produce la "ruptura del azúcar" al que se refiere el termino glucólisis, puesto que el compuesto de 6C, fructosa 1,6 bifosfato, se escinde para dar lugar a 2 intermediarios de 3 carbonos, el gliceraldehído-3-fosfato y la dihidroxiacetona fostato (DHAP).

Reacción 5: Isomerización de la dihidroxiacetona fosfato

- Los productos de las reacciones de la aldosa son compuestos de tres carbonos fosforilados, pero solo uno de ellos – el gligeraldehido 3-fostato – procede por el resto de la vía.
-

Catalizada por la triosa fosfato isomerasa, es la conversión de uno de los 2 azúcares fosfato de 3C, la dihidroxiacetona fosfato (DHAP), en el otro, el gliceraldehído-3-fosfato (G3P). La isomerización de la dihidroxiacetona fosfato tiene lugar a través de un intermediario enediol. En este punto, la glucólisis ha gastado 2 moléculas de ATP y ha convertido un azúcar hexosa en 2 moléculas de gliceraldehído-3-fosfato, cada una de las cuales se metabolizará para producir compuestos de potencial de transferencia de fosfato elevado, que pueden impulsar la síntesis de ATP. 

Fase 2
Reacción 6: Generación del primer compuesto de energía elevada

- En la sexta reacción de la glucolisis el gliceraldehído 3- fosfato se oxida y se fosforila:


Catalizada por la gliceraldehído-3-fosfato deshidrogenasa, genera el primer intermedio de potencial de transferencia de fosfato elevado, porque genera un par de equivalentes reductores. La reacción 6 comporta una oxidación de 2 electrones de carbono del gliceraldehído-3-fosfato a nivel de carboxilo. 

Reacción 7: Primera fosforilación a nivel de sustrato.
- Es una reacción reversible, catalizada por la fosfogliceratocinasa. Esta reacción produce fosforilación a nivel de sustrato, forma un ATP a partir de un ADP (conseguido del citoplasma) y un Pi (que ya tiene el sustrato).

La cataliza la fosfoglicerato quinasa. La gliceraldehído-3-fosfato deshidrogenasa y la fosfoglicerato quinasa están acopladas termodinámicamente. Con 2 reacciones consecutivas, la energía de la oxidación de un aldehído a un ácido carboxílico se conserva en forma de ATP. En este punto, el rendimiento neto de ATP en la ruta glicolítica es cero. La ruta pasa a ser exergónica. Ello comporta una activación del fosfato restante que, en el 3-fosfoglicerato (3PG), tiene un potencial de transferencia de fosfato relativamente bajo. 

Reacción 8: Preparación para la síntesis del siguiente compuesto de energía elevada 

- Esta reacción reversible es de isomerización y es catalizada por la enzima fosfoglicerato mutasa. 
La activación del 3-fosfoglicerto se inicia con una isomerización catalizada or la fosfoglicerato mutasa. La enzima transfiere el fosfato de la posición 3 a la 2 del sustrato para dar 2-fosfoglicerato. En el primer paso de la reacción se transfiere el fosfato desde la enzima al sustrato para formar un intermedio, el 2,3-bifosfoglicerato. La transferencia del fosfato de C-3 al lugar activo de le enzima regenera la enzima fosforilada y forma el producto que se libera. 

Reacción 9: Síntesis del segundo compuesto de energía elevada 

- Es reversible y consiste en la deshidratación del 2-fosfoglicerato para formar fosfoenolpiruvato. Esta reacción es catalizada por la enolasa.
Catalizada por la enolasa, genera fosfoenolpiruvato (PEP), el PEP participa en la segunda reacción de fosforilación a nivel de sustrato. 

Reacción 10: Segunda fosforilación a nivel de sustrato 

- Es irreversible y catalizada por la piruvatocinasa.
- Esta produce una fosforilación a nivel de sustrato, ya que se aprovecha de el potencial alto de transferencia de un grupo fosforilo del fosfoenolpiruvato para formar ATP a partir de ADP y Pi (fosfato inorgánico). 
Catalizada por la piruvato quinasa, el fosfoenolpiruvato transfiere su grupo fosforilo al ADP en otra fosforilación a nivel de sustrato. 


Digestión, absorción y distribución de Hidratos de Carbono

DIGESTIÓN, ABSORCIÓN Y DISTRIBUCIÓN DE HIDRATOS DE CARBONO 

- El alimento proporciona fuentes de energía y materiales de construcción (o renovación) de las estructuras corporales.
Dieta -> Hidratos de carbono
Alimentos de origen animal: Leche ( + importante)
Cereales: Almidón 
Vegetales: Almidón
Frutas: Sacarosa
Leguminosas (frijos, habas, lentejas): Almidón

- El alimento ingerido se introduce en el tracto gastrointestinal (GI). El tracto GI y órganos asociados funcionalmente (Hígado, páncreas), se encargan de la digestión y la absorción. 
- Digestión = Proceso por el que las moléculas de nutrientes se transforman en componentes lo bastante simples como para ser absorbidos en el intestino. Esta regulada por el sistema nervioso, varias hormonas y factores paracrinos. 
- Absorción = Proceso de incorporación de productos de la digestión que realizan las células intestinales (enterocitos) y de ahí, al organismo. 
Principales moléculas contenidas en los alimentos -> Hidratos de carbono, proteínas y lípidos

Tracto gastrointestinal 
- Tubo largo plegado en el que drenan el hígado y el páncreas por medio de conductos secretores.
- Función = Transferir los componentes de los alimentos del exterior al interior del cuerpo. 
  • Estomago y duodeno; proceso inicial de la mezcla del alimento ingerido y su digestión.
  • Yeyuno; continúa el proceso digestivo y empieza el absortivo.
  • Íleon; absorbe los nutrientes digeridos y el intestino grueso interviene en la absorción de líquidos y electrólitos (ayudan a mezclar el alimento).
- El intestino tratará el monosacárido glucosa de forma diferente si lo recibe de la luz intestinal o por vía del aporte sanguíneo mesentérico. 
  • Desde luz intestinal = Se transfiere inalterada al hígado
  • Vía del riego sanguíneo = Se metaboliza a lactato antes de su paso al hígado
Volumen y pH de las secreciones intestinales 
- Saliva = pH alcalino por el bicarbonato que contiene. 
- Contenido de la luz gástrica = Ácido / Moco que la protegue = Alcalino
- El contenido ácido del estomágo es neutralizado por las secreciones muy alcalinas cuando entra en el duodeno. 
- Secreciones intestinales en total = 7.5 L/día
- Vómitos persistentes causan una pérdida directa de agua, iones H y cloruro, además de protasio por los mecanismos compesadores del cuerpo. 
- La diarrea puede ser consecuencia de un aumento de la secreción intestinal o una malabsorción de nutrientes. 

Digestión
- Serie secuencial y ordenada de procesos 
  • Lubricación y homogenización del alimento con líquidos segregados por las glándulas del tracto intestinal
  • Secreción de enzimas; descomponen las macromoléculas en una mezcla de olígomeros, diméros y monómeros. 
  • Secreción de electrólitos, ion hidrógeno y bicarbonato para optimizar las condiciones ambientales para la hidrólisis enzimática
  • Secreción de ácidos biliares para emulsificar los lípidos de la dieta
  • Hidrólisis ulterior de oligómeros y dímeros en el yeyuno mediante enzimas ligadas a la superficie de la membrana
  • Transporte especifico del material digerido a los enterocitos y de ahí a la sangre o linfa
Enzimas digestivas y zimógenos
- Se segregan en la luz intestinal como precursores inactivos llamados zomógenos. 
- Las enzimas que intervienen en la digestión proteíca (proteasas) y la lipasa fosfolipasa A2 se sintetizan como zimógenos y se activan sólo al liberarse a la luz intestinal
- Todas las enzimas digestivas son hidrolasas
- Los hidratos de carbono se hidrolizan a una mezcla de disacáridos y monosacáridos. Las proteínas se fragmentan en una mezcla de dipéptidos, tripéptidos y aminoácidos. Los lípidos se procesan de una manera diferente; se fragmentan en una mezcla de ácidos grasos, glicerol, monoacil y diacilgliceroles. 

Digestión y absorción de HDC
- Los hidratos de carbono de la dieta consisten fundamentalmente en almidones vegetales y animales (polisacáridos), disacáridos sacarosa y lactosa, monosacáridos glucosa, fructosa y galactosa.
- La digestión del almidón y el glucógeno (polisacáridos) la lleva a cabo las endosacaridasas y amilasa producidas por las glándulas salivales y pancreáticas. Los productos de hidrolisis del almidón son el disacárido maltosa, el trisacárido maltotriosa y una unidad ramificada denominada dextrina a-límite. 
- Cuanto mayor la cantidad de disacárido presente en la dieta o producida por la digestión, mayor la cantidad de la disacaridadsa específica correspondiente producida por el enterocito. 
- A medida que aumentan las concentraciones de azúcares monoméricos en la luz intestinal, aumenta la osmolalidad y aparece un descenso compensador de la actividad de las disacaridasas del borde en cepillo. Esto controla la carga osmótica y evita los desplazammientos de líquido. 
- La glucosa, fructosa y galactosa son los monosacáridos primarios que resultan de la digestión de los hidratos de carbono de la dieta. 

Digestión y absorción de lípidos
- Aprox 90% de la grasa de la dieta se encuentra en forma de tracilglicerol o triglicéridos. El resto consiste en colesterol, colesteril ésteres, fosfolípidos y ácidos grasos no esterificados.
- Enzima + importante secretada por el páncreas = lipasa pancréatica.
- Los ácidos grasos de cadena media y corta (menos de 10 átomos de carbono) pasan directamente a través de las células epiteliales al torrente sanguíneo portal hepático. En cambio; los ácidos grasos de más de 12 átomos de C se unen a la proteína fijadora de ácidos grasos y son transferidos al reticulo endoplásmico rugoso del enterocito para resistetizarse a TAG (triacilglicerol).
- El glicerol producido en la luz intestinal no se reutiliza para la síntesis de TAG sino que pasa directamente al sistema porta.
- La síntesis de triacilglicerol requiere la activación de ácidos grasos. La activación de ácidos grasos se consigue con la producción de derivados acil-CoA por la acil-CoA sintasa.

Digestión y absorción de proteínas 
- Los proteínas son hidrolizadas por las peptidasas. Estas enzimas pueden escindir los enlaces péptidicos internos (endopeptidasas) o escindir un aminoácido cada vez de los grupos terminales -COOH o -NH2 del polipéptido (exopeptidasas subclasificadas en carboxipeptidasas y aminopeptidasas). Las endopeptidasas descomponen los polipéptidos largos en oligopéptidos de menor tamaño.
- En el estomágo, el HCL, segregado reduce el pH a 1-2 con la consecuente desnaturalización de las proteínas de la dieta. 
- Las enzimas proteolíticas liberadas por el páncreas son todas liberadas como zimógenos inactivos, de manera similar al pepsinógeno. 
- La digestión final de los peptidos depende de las peptidasas del intestino delgado.
- Los productos finales de esta actividad enzimática de superficie son aminoácidos libres y dipéptidos y tripéptidos que, a continuación, pueden absorberse a través de la membrana del enterocito mediante un transporte mediado por transportador específico. El paso final es la transferencia de aminoácidos libres desde el enterocito hasta la sangre portal. 


Resumen:
Boca -> Masticar alimento 
Glándulas salivales -> hidratación por medio de la amilasa (hidroliza polisacáridos) y lipasa
Estómago -> Homogeneización, hidratación, hidrólisis del almidón, desnaturalización de proteínas e hidrólisis (pH < 2). HCL, lipasa y pepsinógeno (pepsina). Tiempo = 30 mins.
Vesicula biliar -> Sales biliares
Páncreas exocrino -> Amilasa y propeptidasa
Hígado
Duodeno -> (pH -7) activació de tripsinógeno, activación de propeptidasas y fosfolipasa A2, hidrólisis introluminal de almidón, proteínas, lípidos.
Yeyuno -> Enteropeptidasas y Disacáridasas. Absorción de NaCl y H2O. Hidrólisis en la superficie de oligosacáridos y disacáridos y oligopéptidos. 
Íleo -> Absorción de ácidos biliares. Absorción de monosacáridos, aminoácidos libres, dipéptidos y tripéptidos, AGL y monoacil gliceroles. Absorción de NaCl y H2O.
Colón
Ano
+ Enzima más importante del proceso = Amilasa páncreatica (degradación de hidratos de carbono; para identificar páncreatitis se toma como eje la lipasa páncreatica). Esta en glándulas salivales y el páncreas.
+ Glucosa, acarrea agua por lo que es un regulador osmótico.
+ Diarrea acuosa explosiva -> Consumo de mucho HDC, Intolerancia a la lactosa o Intolerancia a carbohidratos. 
+ Normal de trigliceridos = -180

sábado, 18 de abril de 2015

Hidratos de carbono

HIDRATOS DE CARBONO

Generalidades
  • Los hidratos de carbono o sacáridos son moléculas biológicas simples en cuanto a su composición química, sin embargo, desempeñan funciones vitales fundamentales. La denominación de hidratos de carbono se debe a que la mayoría de ellos responde a la fórmula estequiométrica (CH2O)n. 
  • Unidades monoméricas de los hidratos de carbono son los monosacáridos; la unión de 2 monosacáridos forma los disacáridos. Cuando se unen pocas unidades monosacáridas se denominan oligosacáridos y polisacáridos cuando se unen muchos monómeros. 
  • Mediante la respiración, tanto animales como plantas oxidarán estos hidratos de carbono para obtener energía y devolverán a la atmósfera el CO2.
  • Fuente energetica primordial en la dieta humana
Funciones
- Energía -> Metabolismo
- Estructura -> Glucoproteínas y glucolípidos
- Reserva -> Glucógeno
- Respuesta inmunitaria -> Polisacáridos
- Regulación de temperatura -> Quema de glucosa 

Monosacáridos
- Azúcares + simples
- Glúcidos más simples, están formados por una sola molécula por lo que no pueden ser hidrolizados a glúcidos más pequeños. 
- Poseen un grupo carbonilo en uno de sus átomos de carbono y grupos hidroxilo en el resto.
- Se diferencian en 3 aspectos:
1) longitud de la cadena carbonada
2) presencia de grupo aldehído o cetona
3) esteroisómeria
- Si el grupo carbonilo es un aldehido, el monosacárido es una aldosa; si el grupo carbonilo es una cetona, el monosacárido es una cetosa, por lo que químicamente se les denomina polidroxialdehídos y polihidroxicetonas.
- Los monosacáridos + pequeños son los que poseen 3 átomos de carbono y son llamados triosas; aquellos con cuartro, tetrosas; con cinco, pentosas; seis, hexosas y así sucesivamente. 
- Los sistemas de clasificación son combinados. Por ejemplo, la glucosa es una aldohexosa (aldehído de 6C), la ribosa es una aldopentosa (cetosa de 5C).
- Cada monosacárido posee un cierto número de isomeros. 
- Unidades monoméricas de todos los hidratos de carbono.
- Se sintetizan a partir de precursores que se obtienen de CO2 y el H2O por medio de la fotosíntesis. 
- Los organismos heterotrofos (animales) obtienen los monosacáridos a partir de los nutrientes. 
- Responden a la fórmula (CH2O)n encontrándose en un rango de 3 a 7 
- Químicamente los monosacáridos son polihidroxialdehídos o polihidroxicetonas
- Su clasificación se basa atendiendo al grupo carbonilo (C = O), es decir, si este grupo es un aldehído (aldosas) o biene una cetona (cetosas), así como al número de átomos de carbonos.
- Según el número de carbonos; Los monosacáridos más pequeños se denominan triosas, y se indica si se trata de un aldehído o una cetona con el prefijo correspondiente. Así tendremos aldotriosas, aldotetrosas, aldopentosas, aldohexosas, aldoheptosas y lo mismo con las cetosas; cetotriosas, cetotetrosas, etc.
- La glucosa es la + importante.
- Otras aldohexosas importantes son: manosa y galactosa.
- Son isómeros estructurales porque tienen la misma fórmula química pero se diferencian en la localización de sus átomos y grupos funcionales. 
- Presentan esteroísomeria debido a la presencia de carbonos asímetricos, es decir, son moléculas quirales (quiral = mano).

Oligosacáridos
- Compuestos constituidos por moléculas de monosácaridos unidos por enlaces glucosídicos. 
- La reacción entre un hidroxilo cualquiera de un monosacárido con el grupo OH del carbono anomérico (C-1 en aldosas y C-2 en cetosas) de un azúcar diferente, producirá la unión mediante un enlace O-glucosídico de los 2 monosacáridos; este tipo de enlace permitirá la extensión de la molécula, ya que quedará libre siempre un -OH del carbono anomérico para iniciar otro enlace O-glucosídico y podrá formar oligosacáridos o polisacáridos dependiendo de si se unen pocas o muchas unidades. Este tipo de enlace se denomina monocarbonílico, ya que solo uno de los -OH del enlace es aportado por un carbono anomérico.  Sin embargo, si la unión entre 2 monosacáridos se realiza aportando ambos azúcares su -OH del carbono anomérico se producirá un enlace dicarbonílico, imposibilitando que el disacárido siga extendiéndose, y perdiendo también su poder reductor.
- Comprenden aquellos hidratos de carbono que contienen de 3 a 9 moléculas de monosacáridos. 

Polisacáridos 
- Son cadenas, ramificadas o no, formadas por la polimerización de monosacáridos (o alguno de sus derivados) de más de 10 monosácaridos.
- Su función esta normalmente relacionada con la estructura o almacenamiento.
- Polisacáridos aldoglúcemicos o almodonáceos; corresponden a polisacáridos de reserva, más fácilmente hidrolizables y que corresponden a los denominados a-glucanos, es decir polímeros de monosacáridos unidos por enlaces glúcosidicos tipo a 1-4, degradables por las enzimas digestivas humanas y por lo tanto glucemicos o fuentes de glucosa para el organismo. 
- Principales polisacáridos glucemicos; Almidón, glucógeno y dextranos. 
- Polisacáridos no almidonaceos o no glucémicos; corresponden a los polisacáridos estructurales no a-glucanos, que consisten en un elevado número de monosácaridos unidos entre si por enlaces glucosídicos tipo a u otros no digeribles por enzimas humanas (celulosa).

Clasificación:
1) Por el número de carbonos
- Cetosas - cetona (por gpo. funcional)
- Aldosas - aldehído (por gpo. funcional)
- Triosas
- Tetrosas
- Pentosas
- Hexosas
- Heptosas 

2) Según su cadena compuesta por varios carbohidratos (monosacáridos)
- Monosacárido; Glucosa, galactosa, fructosa (1)
- Disacáridos; Lactosa, sacarosa, maltosa (2)
- Oligosacáridos; (3-10)
- Polisacáridos; Almidón, glucógeno (10) 

Por ejemplo:
a) Lactosa (compuesta por 2 monosacáridos galactosa)
b) Maltosa (compuesta por 2 monosacáridos glucosa)
c) Sacarosa (compuesta por 1 monosacárido de fructosa y 1 de glucosa)

Proyecciones:

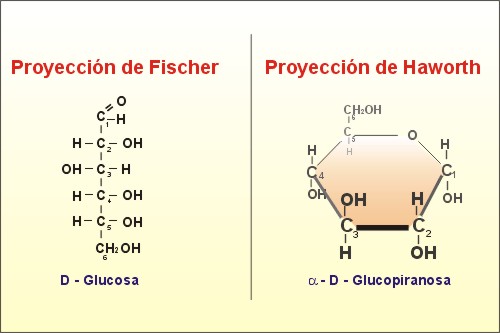
1) Haworth (geométrica) : La proyección de Haworth es una forma común de representar la fórmula estructural cíclica de los monosacáridos con una perspectiva tridimensional simple. Recibe su nombre del químico inglés Sir Walter Norman Haworth. Tiene las siguientes características:
  • El carbono es el átomo implícito. En el ejemplo de la derecha, los átomos numerados del 1 al 6 son todos carbonos. El carbono 1 es conocido como carbono anomérico
  • Los átomos de hidrógeno en los carbonos son también implícitos. En el ejemplo, los carbonos 1 a 6 tienen átomos de hidrógeno no representados.
  • Las líneas más gruesas indican los átomos más cercanos al observador, en este caso los átomos 2 y 3 (incluyendo sus correspondientes grupos -OH). Los átomos 1 y 4 estarían algo más distantes, y los restantes 5 y 6 serían los más alejados del observador.
  • Proyeccion haworth; En disolución, los monosacáridos pequeños se encuentran en forma lineal, mientras que las moléculas más grandes ciclan su estructura. La estructura lineal recibe el nombre de Proyección de Fischer; la estructura ciclada de Proyección de Haworth. En la representación de Haworth la cadena carbonada se cicla situada sobre un plano. Los radicales de la cadena se encuentran por encima o por debajo de ese plano.
La estructura ciclada se consigue en aldopentosas y hexosas. El enlace de ciclación se genera entre el carbono que posee el grupo funcional y el carbono asimétrico más alejado del grupo funcional. Cuando el carbono tiene un grupo aldehído, como grupo funcional, el enlace recibe el nombre de hemiacetálico. Cuando el carbono tiene un grupo cetona, como grupo funcional, el enlace recibe el nombre de hemicetálico.

Estructura química de la alda-D-glucosa
Forma en hexagono recibe el nombre de: Piranosa
Forma en pentagono recibe el nombre de: Furanosa

2) Proyección de Fischer (lineal) : En 1891, Emil Fischer sugirió un método basado en la proyección de un átomo de carbono tetraédrico sobre una superficie plana. En las proyecciones de Fischer la molécula se orienta de forma que los enlaces verticales del centro estereogénico se alejan de nosotros y los enlaces horizontales se acercan a nosotros. La proyección de los enlaces sobre el papel es una cruz, en la cual el C estereogénico se encuentra en el centro.